- 移动端

北京义翘神州科技股份有限公司(Sino Biological Inc.)品牌商
17 年
手机商铺
- NaN
- 0
- 0
- 2
- 2
北京义翘神州科技股份有限公司(Sino Biological Inc.)
入驻年限:17 年
- 联系人:
客服部
- 所在地区:
北京
- 业务范围:
技术服务、试剂、抗体、细胞库 / 细胞培养、ELISA 试剂盒
- 经营模式:
生产厂商
推荐产品
公司新闻/正文
从“富集目标蛋白”到“解析互作机制”:免疫共沉淀Co-IP的7类核心应用与研究案例
80 人阅读发布时间:2026-10-16 15:37
研究蛋白质功能,绕不开一个基本的问题:靶蛋白在细胞内与哪些蛋白相互作用?以怎样的复合物形式执行功能?探究这个问题的实验方法有多种,免疫共沉淀(Co-IP)是“经典中的经典”。那么有哪些场景可以用Co-IP呢?
Co-IP早已超越“免疫沉淀后跑个WB”的粗暴定位,在探究蛋白互作、分析低丰度蛋白基础之上,还广泛用于挖掘互作区域或靶点、绘制互作网络、研究动态蛋白互作以及筛选药物靶点及评估作用机制等。接下来,我们将通过两篇文章,结合7类科研案例,重新认识一下Co-IP的“战场边界”。
一、验证候选蛋白互作
这是Co-IP实验的基本应用场景。验证蛋白互作可以确认生物信息学预测、质谱筛选或功能实验中发现的潜在作用机制是否真实存在,并明确蛋白之间是否形成稳定复合物。蛋白互作可以揭示蛋白稳定性、亚细胞定位、信号转导过程等问题。同时,设计不同刺激条件或基因干预实验,还可进一步分析蛋白互作是否受环境变化、疾病状态或特定信号通路调控。
巨噬细胞分泌的TNF-α在肿瘤微环境中是一把“双刃剑”,通过TNFR1/NF-κB通路诱导细胞生存,或通过蛋白复合物(FADD/caspase-8)诱导凋亡。Chan等人通过蛋白质组学筛选出三阴性乳腺癌(TNBC)转移特异性膜蛋白Sciellin(SCEL),通过Co-IP等一系列实验,发现其直接结合TNFR1蛋白,强化TNF-α促生长和增殖通路,使肿瘤细胞在微环境中抵抗凋亡并成功定植。
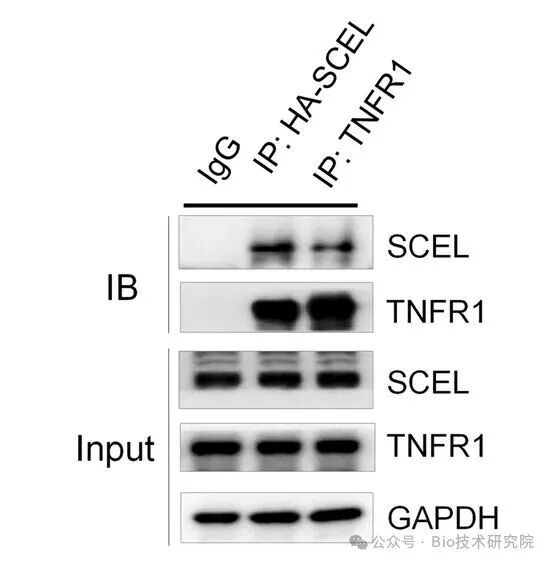
源自文献:Doi: 10.1186/s12929-023-00986-4
通过正反向Co-IP实验验证SCEL与TNFR1之间存在稳定互作。Input结果显示,未进行免疫沉淀的细胞裂解液中均存在SCEL和TNFR1蛋白,GAPDH内参条带一样,说明各组总蛋白量基本一致。
Co-IP结果显示,使用IgG抗体进行免疫沉淀时,SCEL和TNFR1均未出现条带,说明蛋白沉淀不是由抗体或磁珠的非特异吸附造成。使用HA-SCEL抗体进行IP后,WB检测结果有TNFR1条带,使用TNFRA抗体进行IP后,结果能检测到SCEL蛋白,说明两种蛋白能够相互结合作用。因此,SCEL能够与TNFR1形成稳定的蛋白复合物,结合文章的其他实验,可以证明SCEL促进TNF-α诱导的抗凋亡通路激活,增强转移性TNBC细胞在肺部定植。
二、发现未知互作蛋白
发现某种蛋白存在互作机制,但不能确定其“搭子是谁”。这时我们可以结合质谱(LC-MS/MS)对免疫沉淀复合物进行鉴定,系统筛选潜在互作伙伴。在确定候选蛋白后,通过WB检测进行验证。Co-IP结合质谱、WB能够解析蛋白复合物组成,发现新的调控因子。
泛素-蛋白酶体系统(UPS)介导的蛋白质降解影响神经元功能。蛋白酶体如何结合分子马达蛋白以及该过程如何调控的机制,探索仍不够深入。Liu等人研究发现蛋白酶体结合蛋白PI31(PSMF1)作为衔接蛋白,介导蛋白酶体与动力蛋白轻链(DYNLL1/2)的结合。研究人员为寻找PI31的新的结合蛋白,解析其促进神经元外周区域蛋白质稳态的分子机制,在果蝇中表达N端带有HA标签的PI31,进行HA免疫沉淀实验,并进行无标记定量质谱分析以及WB验证检测。
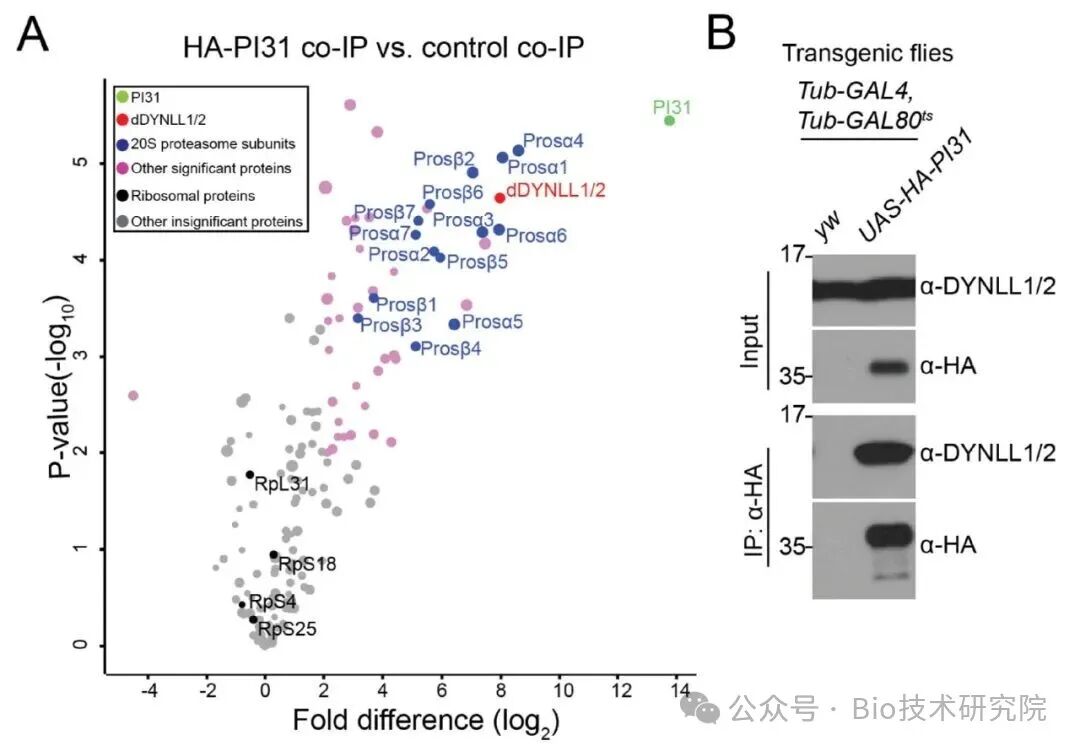
源自文献:Doi:10.1016/j.devcel.2019.06.009
图A:质谱检测结果。用HA-PI31作为诱饵蛋白,通过HA抗体进行免疫沉淀,复合物进行LC-MS分析。在这个火山图中,横坐标表示蛋白在PI31 IP组与对照组之间的富集倍数,纵坐标表示统计显著性。越靠右且越靠上的蛋白,在PI31免疫沉淀复合物中富集越明显,统计可信度更高。
不同颜色的圆点代表不同类型的蛋白。绿色点代表PI31蛋白,说明IP实验成功富集了诱饵蛋白。蓝色点代表不同的20S蛋白酶体亚基,集中在右上方,说明他们在HA-PI31样品中显著富集,PI31能够与20S蛋白酶体形成复合物。红色点代表动力蛋白因子DYNLL1/2,同样出现显著富集,提示PI31可能与其存在结合。紫色点表示其他显著富集蛋白,说明PI31复合物中包含多个调控因子。分布在左下方的黑色点(核糖体蛋白)及灰色点(其他蛋白)结合特异性低。
图B:左上方标明果蝇的品系和实验体系,野生型(yw)不表达PI31蛋白,实验组(UAS-HA-PI31)全身表达带HA标签的PI31融合蛋白。Input确定目的蛋白的表达情况,HA-PI31仅在实验组表达,DYNLL1/2在野生型和实验组都表达,说明实验体系良好。用抗HA抗体进行免疫沉淀,野生型中没有检测到DYNLL1/2,而实验组有明显的条带,说明其能够随HA抗体共同沉淀下来,支持这两种蛋白存在互作关系。HA有条带说明IP实验成功。随后研究人员还在哺乳动物细胞(小鼠胚胎成纤维细胞)利用GFP标签进行了Co-IP验证,证实PI31和DYNLL1/2存在蛋白互作。
三、研究信号复合物的动态组装
在不同时间进行刺激,Co-IP可分析信号激活进程中激酶、磷酸酶等调控分子的时序募集与解离,还原复合物组装、解离过程中的动态变化,解析信号激活与负反馈终止的调控机制。
套细胞淋巴瘤(MCL)的病理发生与B细胞受体(BCR)信号异常有关,但具体调控机制还不确定。CEACAM1是经典的ITIM型受体,在B细胞中的功能存在争议。Serene Xavier等人为确定CEACAM1在BCR信号中的作用与机制,在BCR激活的不同时间点,直接分析CEACAM1蛋白复合物中,活化型SYK激酶与抑制型SHP-1磷酸酶的结合变化情况。
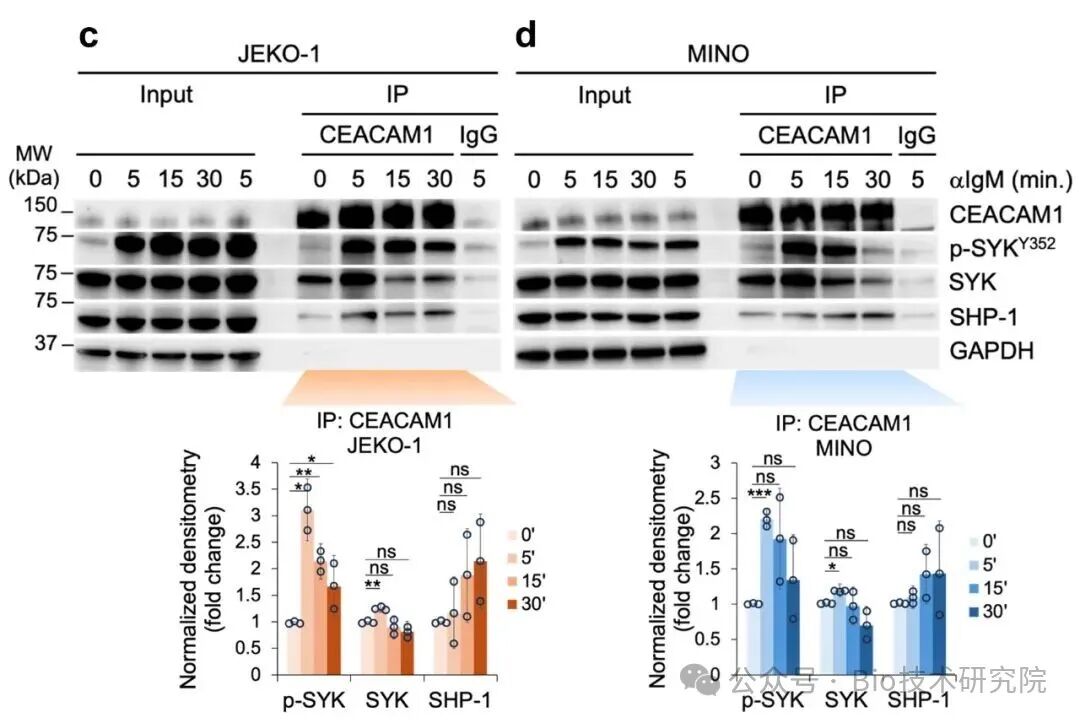
源自文献:doi: 10.1038/s41467-025-60208-3
实验选择两种MCL细胞系:JEKO-1和MINO,均能高表达CEACAM1蛋白。用IgM抗体交联BCR模拟抗原介导的激活,设置4个时间梯度覆盖从早期激活到负反馈终止的周期。除了直观的WB电泳图,研究人员还对条带灰度进行量化统计,分析不同时间点不同蛋白的变化显著性。
以JEKO-1细胞系结果(图c)为例,在Input总蛋白结果中,CEACAM1、SYK、SHP-1在各时间点条带亮度均一,说明BCR刺激不能改变这些蛋白的表达量。磷酸化SYK(p-SYK)在刺激后快速升高,30min有所回落,符合BCR激活特性,说明细胞刺激实验成功。GAPDH总蛋白各泳道条带一致,总蛋白量上样量一致。
免疫沉淀以IgG抗体作为阴性对照,各蛋白均无非特异性条带。以CEACAM1抗体进行IP,WB结果显示CEACAM1各时间节点条带亮度基于一致,说明IP效率稳定。p-SYK在未刺激时仅有少量条带,刺激5min后显著上调,15min仍保持高水平,30min稍有下降,说明在BCR激活早期,磷酸化的SYK被快速招募到CEACAM1蛋白复合物中。而总SYK蛋白未出现此变化,仅在刺激初始阶段增加,其他阶段保持一致,说明CEACAM1优先结合p-SYK而非总SYK。SHP-1的变化趋势与总SYK相似。统计学结果显著,p-SYK在不同时间点Co-IP结果存在显著差异,总SYK仅在5min有显著差异,其它时间点之间差异不显著。SHP-1未达到统计学差异显著性。
MINO细胞系与JEKO-1整体趋势一致,统计学结果略有差异,p-SYK在刺激后5min显著富集,其它时间点不显著。这属于细胞系间异质性造成的,不影响主要的实验结论。总之,这张图说明CEACAM1对BCR信号具有双重调控机制。BCR激活后,CEACAM1快速招募p-SYK,随着时间变化,CEACAM1逐渐招募负调控磷酸酶SHP-1,通过去磷酸化作用使SYK失活,避免BCR信号过度激活。
四、定位互作结构域和关键区域
免疫共沉淀(Co-IP)常用于定位蛋白互作区域。通过构建一系列不同片段的截断体(如全长、N端截短、关键区域、C端截短),与互作蛋白共转染细胞。如果某段截断体失去结合能力,则表明该区域为互作关键区域。检测不同截短体与互作蛋白的结合情况,逐步缩小互作区域,锁定最小功能域。我们还可以结合结构预测或文献分析,筛选候选氨基酸位点,构建单位点突变体。若突变后互作减弱或消失,则说明该氨基酸是维持互作的关键位点。如果仅是轻度减弱,可能需要进行双位点或多位点联合突变验证。
埃博拉病毒(EBOV)致死率高,且进化出了多种拮抗宿主I型干扰素通路的机制。Makoto Kuroda等人鉴定出22个能显著抑制病毒活性的干扰素刺激基因(ISGs),并发现CCDC92能同时抑制病毒转录和病毒粒子组装,因此研究人员对其进行了详细的机制研究。Co-IP结果证实CCDC92与EBOV核蛋白NP之间存在直接的蛋白互作。截短体实验发现NP的N端(aa 39-240)是与CCDC92结合的关键区域,同时CCDC92的C端卷曲螺旋结构域(aa 81-151)是其结合NP所必需的。功能验证实验说明缺失aa 81-151的CCDC92突变体失去抗病毒活性。这一发现为开发靶向EBOV核蛋白与宿主因子互作的新型抗病毒药物提供了重要机制和候选靶点。
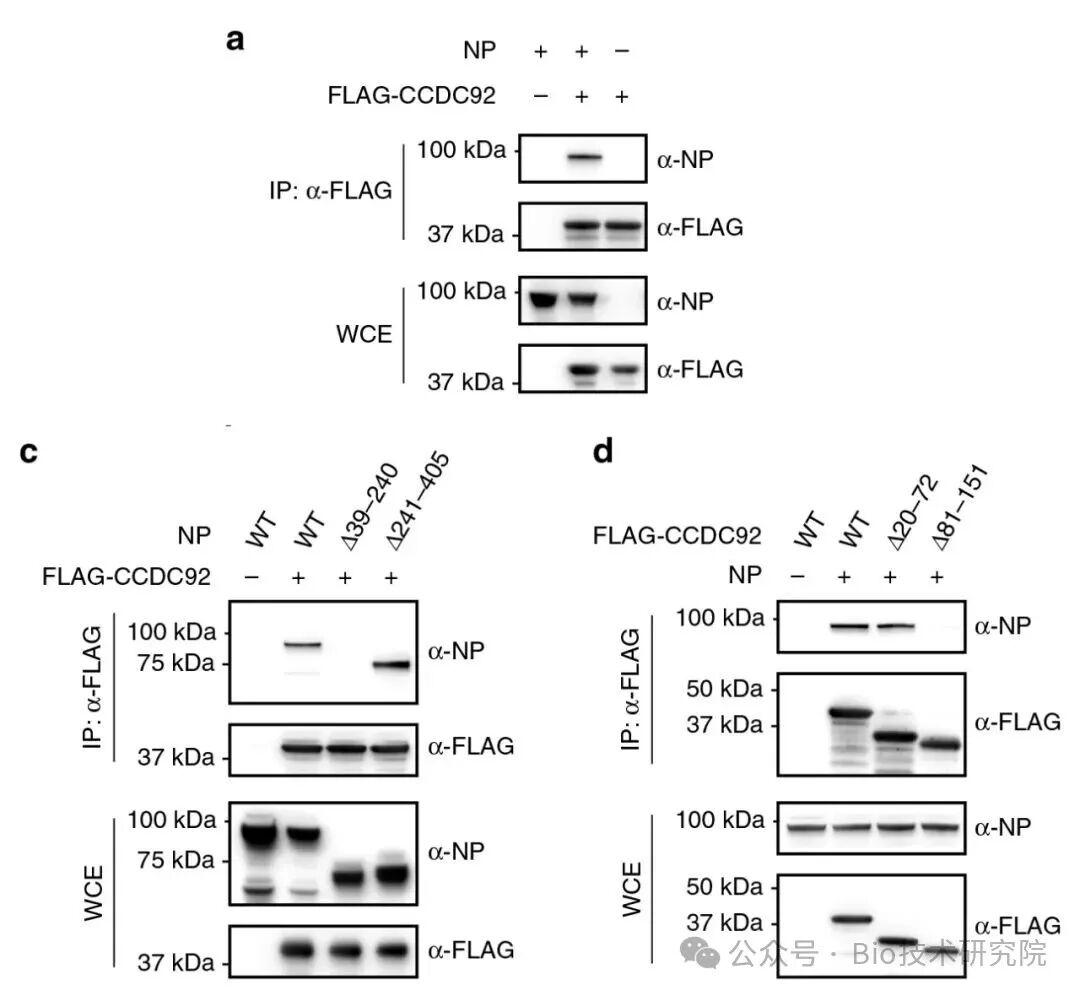
源自文献:Doi: 10.1038/s41467-020-16768-7
· Co-IP验证病毒NP与CCDC92存在互作(图a所示)。研究人员在前期筛选中发现CCDC92过表达能使EBOV滴度降低近1000倍,显著抑制病毒微型复制子的活性,减少NP被包装进入VLP,因此研究人员提出CCDC92直接结合NP的假设。在HEK293T细胞中共表达NP和带有FLAG标签的CCDC92,用FLAG抗体进行免疫共沉淀,复合物分别用FLAG抗体和NP抗体进行WB检测,结果显示,Co-IP复合物中存在NP和CCDC92,而仅表达NP或FLAG-CCDC92的对照组无NP,证实两种蛋白间存在互作。全细胞裂解液(WCE)证实两种蛋白均成功表达。这为后续的结构域定位和机制研究打下基础。
· Co-IP定位NP上与CCDC92结合的关键结构域(图c所示)。NP蛋白有两个重要的结构域:N端(aa 39-240,负责RNA结合与寡聚化)、C端(aa 241-405)。本实验构建野生型(WT)及两个截短体Δ39-240(缺失N端)、Δ241-405(缺失C端)的NP蛋白。Co-IP结果显示,Δ39-240截短体的复合物不含NP蛋白,而野生型和Δ241-405的复合物能检测到对应的NP蛋白,说明NP蛋白的39-240区域是介导其与CCDC92结合的关键结构域。WCE显示各组NO均成功表达,野生型分子量约100kDa,截短体分子量相应降低,条带位置符合理论大小。泳道2-4的CCDC92表达量一致,转染实验稳定。
· 反向Co-IP定位CCDC92上与NP结合的关键结构域(图d所示)。CCDC92含有卷曲螺旋(Coiled-Coil)结构域,研究人员利用Jpred4预测并构建两个不同的突变体:Δ20-72和Δ81-151。用FLAG抗体进行IP,结果显示CCDC92 WT出现NP条带,Δ20-72共沉淀的NP与WT相当,而Δ81-151截短体无NP共沉淀条带,说明CCDC92的C端卷曲螺旋结构域(aa 81-151)是与NP结合的关键结构域。WCE结果证实所有突变体均成功表达,且分子量符合预期,NP表达量基本一致,排除假阴性。
研究人员通过不同的截短体映射实验,精准定位了CCDC92(aa 81-151)与EBOV NP(aa 39-240)的互作界面,与后续的功能学验证结果契合,阐明新的抗病毒机制。ISG CCDC92通过其C端卷曲螺旋结构域结合病毒NP的N端叶,阻断NP-VP40相互作用并破坏病毒转录复合物的组装,进而遏制埃博拉病毒的复制。
本文主要分享Co-IP实验在候选蛋白互作验证、未知蛋白互作筛选、信号复合物动态组装及互作关键区域定位场景的应用。下一篇文章我们将继续分享Co-IP在翻译后修饰、蛋白降解机制及药物评价这三个场景的应用,欢迎关注微信公众号“Bio技术研究院”。