- 移动端
北京义翘神州科技股份有限公司(Sino Biological Inc.)品牌商
17 年
手机商铺
- NaN
- 0
- 0
- 2
- 2
北京义翘神州科技股份有限公司(Sino Biological Inc.)
入驻年限:17 年
- 联系人:
客服部
- 所在地区:
北京
- 业务范围:
技术服务、试剂、抗体、细胞库 / 细胞培养、ELISA 试剂盒
- 经营模式:
生产厂商
推荐产品
公司新闻/正文
蛋白互作不知道选哪个实验?一文搞懂Co-IP、Pull-down、SPR、FRET…原理及选择标准
123 人阅读发布时间:2026-09-11 10:50
蛋白质很少“单打独斗”,信号转导、基因转录、代谢调控等大部分生命活动都依赖于蛋白质相互作用(Protein-Protein Interactions, PPI)。我们在进行机制探索、通路验证、靶点确认、药物筛选时,遇到过这些困惑吗?
想验证两个蛋白是否互作,应该做Co-IP还是Pull-down?
想看活细胞内动态互作,是不是要做FRET、BRET或NanoBiT?
想研究信号通路,用IP-MS还是TurboID/BioID?
想证明“直接结合”并测亲和力,应该选SPR、BLI、MST或ITC?
问题不是“有没有办法”,而是“方法太多不知道选哪个”。Co-IP、Pull-down、FRET、SPR、BLI、IP-MS……这些技术都能研究“蛋白互作”,但解决的问题不同。Co-IP阳性并不能直接证明两个蛋白存在直接结合,FRET也不能简单等同于形成稳定复合物,SPR回答的是另一层面的结合亲和力问题。因此,选择蛋白互作技术之前,首先需要明确:究竟想获得哪一层证据?
然而,许多科研人员在设计课题时,常陷入技术选型的误区:耗费数月做Co-IP却因结合较弱导致阳性信号缺失;或者在酵母双杂交(Y2H)中筛出一堆克隆,后期验证时却发现大多是假阳性。选错技术,不仅浪费宝贵的样品与试剂,更容易耽误课题进度。成熟的蛋白互作研究必须——技术组合+多层验证。
一、选择之前,先问清楚4个问题
比如是否存在互作、是否直接结合、结合强弱、互作是否发生在活细胞内、是否受刺激调控、是否需要对整个互作体系进行研究?
细胞裂解液、纯化的重组蛋白、活细胞、组织样本、体内样本……
互作是否较弱或瞬时、是否依赖翻译后修饰、是否属于膜蛋白、是否存在多亚基复合物?
定性、定量还是定位?动力学或亲和力数据?互作信号通路或互作区域、关键位点、调控条件等机制信息?
二、一张表了解10种蛋白互作技术
|
技术 |
体内/体外 |
筛选/验证 |
定量能力 |
样本类型 |
主要应用 |
|
Co-IP |
体内 |
验证 |
半定量 |
细胞裂解液 |
已知互作验证 |
|
Pull-down |
体外 |
筛选/验证 |
半定量 |
纯化蛋白、裂解液 |
直接互作验证 |
|
SPR |
体外 |
验证 |
定量 |
纯化蛋白 |
亲和力测定 |
|
BLI |
体外 |
验证 |
定量 |
纯化蛋白 |
亲和力测定 |
|
MST |
体外 |
验证 |
定量 |
纯化蛋白 |
亲和力测定 |
|
Y2H |
体内 |
筛选 |
酵母细胞 |
筛选未知互作 |
|
|
FRET |
体内 |
验证 |
半定量 |
活细胞 |
互作动态追踪 |
|
NanoBiT |
体内 |
验证 |
半定量 |
活细胞 |
互作动态追踪 |
|
ITC |
体外 |
验证 |
定量 |
纯化蛋白 |
热力学分析 |
|
IP-MS |
体外 |
验证 |
半定量/定量 |
细胞/组织 |
互作网络解析 |
三、10种技术分别适合哪些场景?
Co-IP是研究体内蛋白互作的经典方法,用于确定两种蛋白质在完整细胞内的相互作用。实验采用非变性温和裂解液,在保留细胞内天然蛋白质复合物结构的前提下,用靶蛋白抗体“钓”出复合物。用Protein A/G磁珠捕获抗体-蛋白复合物,反复洗涤去除杂蛋白。洗脱复合物后,通过WB检测已知互作蛋白或用质谱鉴定未知互作蛋白。
Co-IP在接近生理条件的环境下进行,能够保留天然构象及辅助亚基,适用于验证生理状态下的蛋白互作,还能排除过表达造成的假阳性。Co-IP还可检测依赖于修饰的蛋白互作,以及检测多个潜在互作“搭子”。Co-IP阴性不一定代表不存在互作,阳性也不能证明直接结合,无法排除通过第三方蛋白形成的间接结合。如果需要进一步区分,则需要进行体外重组实验(如GST pull-down)进行验证。
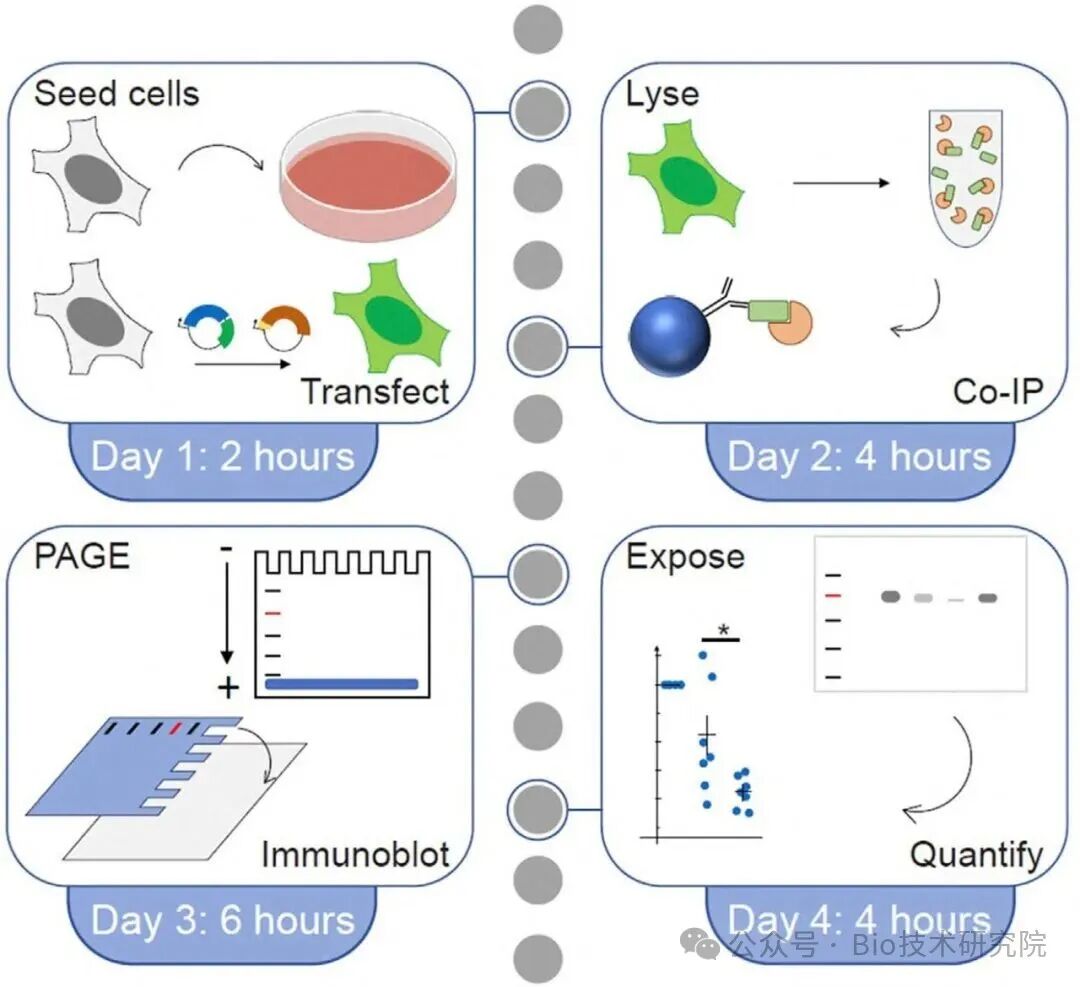
半定量Co-IP实验技术操作流程(源自文献:)
Pull-down是体外验证蛋白质相互作用的经典技术,核心是将带有GST、His、Strep等标签的诱饵蛋白固定于固相亲和载体,与纯化蛋白或细胞裂解液共同孵育以捕获结合蛋白,经洗涤去除非特异性结合后,通过SDS-PAGE、免疫印迹或质谱分析鉴定互作关系。
Pull-down体系条件可控,可精准调控缓冲液组成、离子强度与辅因子,既能验证蛋白二元直接互作、排除细胞内间接桥接干扰,也可用于筛选未知结合蛋白、定位蛋白互作结构域。但体外重组蛋白易出现折叠、聚集异常,且缺乏翻译后修饰,可能遗漏PTM依赖型互作,可通过加入ATP、Mg2+等辅因子或采用哺乳动物表达系统优化。
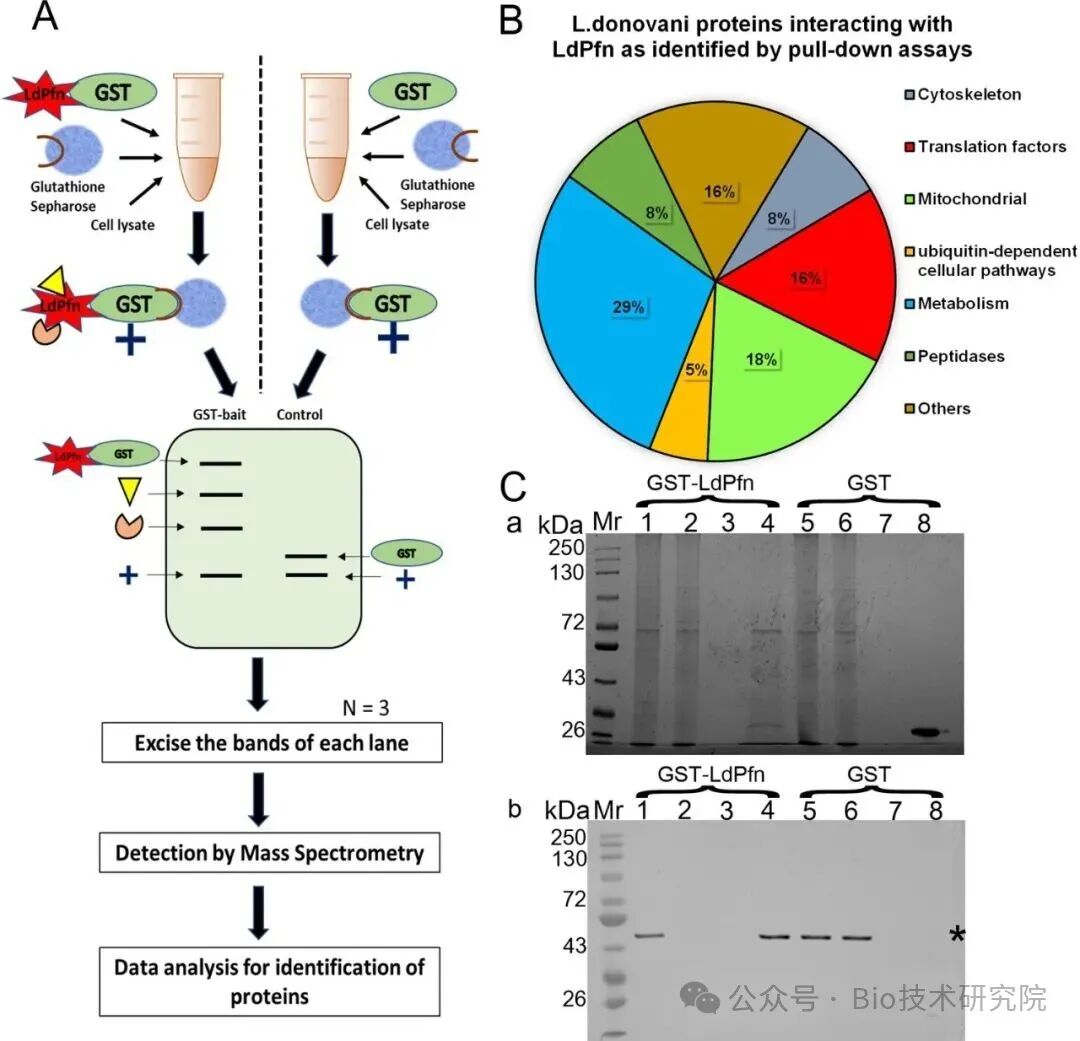
GST Pull-down实验体系及质谱、WB验证结果(源自文献:)
表面等离子共振(SPR)是无标记、实时的生物分子互作定量检测技术。其原理为将诱饵蛋白固定于金膜芯片表面,待测分子流经时发生结合会引起芯片表面折射率改变,通过共振角位移实时记录结合-解离动态曲线,可精确计算平衡解离常数KD、结合速率kon、解离速率koff等动力学参数。
该技术无需荧光或同位素标记,灵敏度可达μM至nM级,适用于蛋白-蛋白、蛋白-核酸、蛋白-小分子互作分析及药物靶点筛选。但该技术对样品纯度要求高,检测成本高、通量较低,更适合关键互作的定量验证而非大规模初筛。
生物膜干涉技术(BLI)是一种无标记、光学生物传感技术,实时定量分析生物分子相互作用的结合强度与动力学。其原理是将配体固定于光纤探头末端的生物传感器表面,浸入样品后,蛋白互作结合引起传感器表面的干涉光谱发生位移,实时监测结合过程。
BLI抗杂质干扰能力强,血清、培养基等粗样本可直接检测。检测通量更高,可并行检测多个样本与浓度梯度,样品消耗量低于SPR,适用于抗体筛选、蛋白突变体亲和力比较、中高通量药物筛选等场景。实验需摸索蛋白固定化条件,同时需注意蛋白聚集、多价结合等因素会干扰结果准确性。
微量热泳动(MST)基于温度梯度场中分子热泳泳动效应。其原理为对靶蛋白进行荧光标记,通过红外激光在毛细管内建立微尺度温度梯度,分子因尺寸、电荷及水合层特性差异呈现不同热泳速率;配体与靶蛋白结合形成复合物后,上述性质改变引发热泳信号偏移,通过浓度梯度滴定拟合曲线,即可计算解离常数Kd、结合化学计量比及热力学参数,定量表征两个蛋白之间的亲和力强弱。
该技术在均相溶液中检测,样本消耗量低,适合蛋白样品量有限的研究。但不同体系信号窗口差异较大,荧光标记、缓冲液成分、蛋白聚集及非特异吸附均会影响结果,需结合体系优化条件。
酵母双杂交(Y2H)是经典的体内遗传学蛋白互作筛选技术,基于转录因子功能重构原理:将诱饵蛋白与转录因子DNA结合域(BD)融合,猎物蛋白与转录激活域(AD)融合,两蛋白互作则使BD与AD空间靠近,重构完整转录因子,驱动HIS3、LacZ等报告基因表达,通过营养缺陷筛选或显色反应检测互作。
Y2H可检测微弱、瞬时互作,还可进行全基因组筛选,一次性筛查数千至数万个潜在互作蛋白。实验在活细胞内进行,无需纯化蛋白。存在假阳性风险,常与Co-IP联用。
荧光共振能量转移(FRET)在供体和受体荧光团距离足够近(<10nm)时,供体受激发后将能量转移至受体,受体发光,通过检测发射光谱变化判断是否互作。FRET可实时追踪活细胞内蛋白互作的时空变化,明确互作的亚细胞定位,适用于信号传导、蛋白转运、构象变化等动态过程研究。
NanoBiT属于分裂荧光素酶互补技术,将NanoLuc荧光素酶裂解为一个大片段(LgBiT)和一个小的高亲和力肽(HiBiT)。蛋白互作时两个亚基重构,恢复荧光素酶活性并产生发光信号,能够以最小的扰动实现蛋白质的灵活标记和定量。
NanoBiT技术不需要外源激发光,背景信号较低、灵敏度高,适合监测配体、药物或信号刺激引起的微弱或瞬时互作,用于活细胞或生物体内蛋白互作的实时检测。检测操作简单、信号稳定,适合96/384孔板的高通量筛选格式。
等温滴定量热法(ITC)在恒定温度下直接测量复合物形成过程中的热量变化,通过测量互作时吸收或放出的热量,拟合计算得到解离常数、自由能等参数。实验过程无需固定化修饰,蛋白在接近生理状态的溶液中反应,样品不会遭到破坏可回收继续实验。但需要毫克级高纯度的蛋白,样品消耗量较大。对亲和力过高或焓变小的互作检测灵敏度有限,常与SPR、BLI技术联用。
这是亲和纯化或免疫沉淀与质谱联用的蛋白互作网络分析技术,通过免疫沉淀或标签亲和纯化富集诱饵蛋白及其结合复合物,经胰酶消化后通过液相色谱-串联质谱鉴定,可一次性获得数十至数百个候选互作蛋白。实验保留蛋白质的天然修饰与胞内互作环境,结合GO、KEGG等数据库可系统解析互作网络、挖掘新调控机制。但存在假阳性风险,高丰度蛋白、非特异吸附、过表达易干扰结果。需设置IgG、空白微珠等对照,候选蛋白需用一对一Co-IP或其他方法二次验证。
四、到底怎么选?按实验需求匹配技术
· 探索全新机制:优先选择IP-MS。
· 验证已知假设:选Co-IP与Pull-down的组合。
· 回答动力学机制:选择SPR、BLI或MST。
· 难溶蛋白/膜蛋白:建议采用临近标记或酵母双杂交。
· 依赖翻译后修饰(如磷酸化、泛素化):优先选择Co-IP。
高水平研究往往不依赖单一技术,而是构建多维度互补的证据链:
· 预测/筛选:Y2H或IP-MS 筛选。
· 体内结合:Co-IP。
· 体外结合:GST Pull-down。
· 定位与突变:荧光共定位、FRET、Cryo-EM。
· 互作强度:SPR、BLI
金标准组合通常:Co-IP(体内)+Pull-down(体外)+SPR/BLI(定量)。